


Au fil des millions d'années qui ont vu les espèces se transformer par sélection naturelle, certaines d'entre elles ont semblé faire demi-tour en revenant à un milieu qu'elles avaient abandonné longtemps auparavant. C'est, par exemple, le cas de la baleine qui, après avoir quitté, comme tous les mammifères, la mer pour la terre ferme, y est ensuite retournée : cela veut-il dire que la baleine d'aujourd'hui a ainsi retrouvé les caractéristiques de son lointain ancêtre ? Comment pourrait-on définir cette apparente régression ? Existe-t-il un « schéma » évolutif des espèces ? A-t-on le droit de dire que l'histoire du vivant peut se répéter, qu'elle peut réemprunter les étapes d'un passé qu'on croyait abandonné à jamais ?
Le pari de Darwin
Il y un siècle et demi, Darwin, par une observation minutieuse de la Nature, a posé les bases de la théorie de l'Évolution, jamais remise en cause depuis par les scientifiques, bien que souvent remaniée et réactualisée en fonction des connaissances nouvelles. Le naturaliste anglais ne connaissait pas la génétique - support de l'hérédité - mais il était convaincu que l'acquisition de nouveaux caractères et la perte des anciens était irréversible. C'était une conviction mais nullement une démonstration scientifique : après tout, pourquoi ne pas imaginer - même par hasard - qu'une espèce retrouve ses caractéristiques anciennes, archaïques, à la façon d'un film qu'on aurait repassé à l'envers ?
L’ADN est le support de l’hérédité : le code génétique qu’il contient – et  que nous avons déjà longuement évoqué (voir par exemple le sujet : le hasard au centre de la vie) – permet la transmission puis l’apparition des caractéristiques qui font appartenir un individu à une espèce donnée. Que ce code comporte une erreur de transcription et voilà le message génétique modifié : c’est cela qu’on appelle une mutation qui pourra être, selon les cas, favorable (pas très souvent), délétère (rarement) ou neutre (cas le plus fréquent). Ces mutations sont totalement indispensables à l’évolution adaptative des espèces mais on comprend que seules celles qui sont favorables seront conservées par la sélection naturelle puisqu’elles confèrent un avantage à leur porteur. Ce nouvel individu, favorisé par la mutation, développera une descendance plus robuste que les autres qui, au fil de quelques générations, en viendra à supplanter peu à peu la population d’origine. On comprend bien cette « avancée » dans le temps mais comment pourrait-il y avoir une « évolution à rebours » ?
Pour qu’une espèce voit réapparaître des caractéristiques de son passé, il est certainement nécessaire que : 1. les conditions de milieu aient à nouveau changé et surtout que : 2. l’ancienne formule du code génétique ait été conservée quelque part dans l’ADN transmis au fil du temps. Cela est-il oui ou non possible ? Ce n’est que récemment que la question a pu être tranchée.
L’irréversibilité de l’évolution
Des travaux sur l’inévitable mouche à vinaigre (drosophila melanogaster) ont, dans un premier temps, orienté les réflexions sur le problème. On sait que cette mouche est particulièrement intéressante pour  la génétique (c’est d’ailleurs sur elle que les pionniers de la discipline comme Morgan dans les années 1930 ont le plus travaillé) car, à partir d’une souche d’origine dite « sauvage », il est possible d’observer une multitude de mutations qu’on pourra alors étudier en les sélectionnant : la drosophile se reproduit en effet facilement et surtout très vite ce qui permet à un observateur d’examiner des dizaines de générations en quelques semaines. La reproduction du vivant en accéléré en quelque sorte. Des scientifiques ont donc observé une colonie de drosophiles sur une cinquantaine de générations, en modifiant les conditions environnementales (nourriture, luminosité, température, etc.) de façon à faire apparaître un maximum de souches mutées. Chaque fois, ils ont noté les modifications permettant aux insectes de survivre. Dans un deuxième temps, ils ont replacé les mouches dans leur milieu d’origine, point de départ des premiers individus étudiés. Ils ont encore attendu une cinquantaine de générations et… observé que les mouches retrouvaient les caractéristiques de leurs ancêtres du point de départ : normal, me direz-vous, de voir réapparaître les caractères les mieux adaptés au milieu d’origine. Alors, retour en arrière ? Eh bien non ! Les caractères
 morphologiques et adaptatifs ont bien reparu… mais avec un matériel génétique différent : les chromosomes des mouches portaient en effet de nombreuses variantes (des allèles) prouvant que l’évolution avait bel et bien continué d’avancer ; il s’agissait en l’occurrence d’une nouvelle adaptation à un milieu identique, donnant des réponses apparentes identiques… mais génétiquement différentes. Ici, l’évolution n’est donc pas revenue en arrière…
Aller plus loin dans l’analyse de ce mécanisme d’irréversibilité, c’est chercher à en expliquer les raisons « biologiques ». C’est précisément ce qu’a fait un généticien américain, Joseph Thornton, de l’université de l’Oregon, travaux dont la presse spécialisée s’est récemment faite l’écho. De quoi s’agit-il ? Pour ne pas entrer dans des détails techniques bien trop complexes, essayons de les résumer succinctement. On a dit que des mutations apparaissent au fil du temps et des générations d’individus. De ce fait, puisque les paléontologues savent quand se sont différenciées les différentes lignées animales, il est possible de dater l’apparition des mutations pour, par exemple, une protéine bien précise et de remonter dans le temps jusqu’à la protéine de départ. Thornton a étudié une protéine spécifique intervenant dans le système endocrinien mais peu importe : appelons-la « protéine GR ». Il est parvenu à récréer la protéine GR « archaïque », celle qui existait il y a plus de 400 millions d’années et, surtout, il l’a comparée à la protéine GR actuelle. Bilan : 37 mutations successives dont seulement 7 peuvent expliquer les différences entre les deux versions. A quoi ont bien pu servir les 30 mutations inopérantes ? s’est demandé Thornton. Il a donc enlevé les 7 mutations « actives » en pensant obtenir une protéine à nouveau archaïque : surprise, le produit obtenu était complètement inactif, incapable d’entraîner une quelconque action métabolique. La conclusion tombe sous le sens : les mutations « neutres », sans conséquences apparentes, sont en réalité quand même fort importantes puisqu’elles empêchent la protéine de retrouver ses caractéristiques d’origine… Mais pourquoi ?
L’explication est la suivante : les modifications neutres n’entraînent aucune action et, du coup, la sélection naturelle ne les enlève pas puisqu’elles n’avantagent, ni ne désavantagent la molécule qui en est porteuse. L’évolution ne les « voit » même pas. Oui mais elles existent, ces mutations neutres, et empêchent la molécule de retrouver sa forme d’origine… et donc ses fonctions. Pour qu’elle redevienne opérationnelle comme au départ, il faudrait que la protéine en question subisse à nouveau les mêmes mutations naturelles, dans le même ordre évolutif mais inversé : il s’agit là d’une éventualité dont, on le comprend aisément, la probabilité est voisine de zéro.
Ce qui est valable pour une protéine, l’est a fortiori pour un individu entier, bien plus complexe. On peut donc aujourd’hui affirmer que, non, décidément, l’évolution ne rebrousse pas chemin et que la transformation des êtres vivants – comme l’Histoire – ne repasse pas les plats. On savait depuis le siècle dernier que les nageoires de la baleine n’étaient pas les mêmes que celles de son ancêtre marin : on comprend à présent pourquoi.
Les moteurs de l’évolution
L’évolution va toujours de l’avant et ce qui est perdu l’est définitivement. J’ai écrit quelque part dans un autre sujet que 99% des espèces vivantes ayant un jour existé sur notre planète ont disparu pour toujours – après avoir souvent vécu bien plus longtemps que l’Homme ne le pourra jamais - et que l’évolution ne pourra plus les récréer (que l’Homme puisse le faire à partir de quelques brins d’ADN est une autre histoire hors de notre propos d’aujourd’hui). Les êtres vivants se transforment au fil du temps, en fonction des variations du milieu où ils se trouvent, selon des mécanismes complexes que l’on commence à décrypter et dont on sait que le hasard est le grand ordonnateur (ce qui est logique si c’est le milieu qui commande). Quatre moteurs principaux sont aujourd’hui retenus par les spécialistes :
* les mutations dont on vient de parler et qui représentent la source de nouveauté véritable de l’évolution ;
* la sélection naturelle qui permet de sauvegarder ou non tel ou tel caractère en fonction de ce qu’il peut apporter à un individu confronté à un milieu donné ;
* les mécanismes de brassage, c’est à dire tout ce qui permet la diversification des espèces (reproduction sexuée, isolement géographique, grandes migrations, etc.)
* et la dérive, facteur moins connu (qu’on appelle aussi le hasard d’échantillonnage) : puisque les parents n’ont forcément qu’une descendance limitée, il ne peut exister qu’une très faible partie des combinaisons génétiques possibles (leur nombre potentiel est en effet immense et seules quelques rares d’entre elles voient le jour) et c’est le hasard - et lui seul - qui permet l’apparition de l’une ou l’autre.
 d’un brassage opérant ou non… C’est la raison pour laquelle j’insiste souvent sur le fait qu’on ne peut pas parler de progrès (les rats musqués sont-ils mieux adaptés, plus « évolués » que les velociraptors ? Tout dépend du temps et du lieu dont on parle). Il ne faut pas parler de progrès mais d’une évolution adaptative. Le « progrès » si cher à certains n’est qu’une vue de l’esprit qui relève peut-être de la philosophie mais certainement pas de la science : c’est d’ailleurs la raison pour laquelle Darwin avait ce mot en horreur. Et cela mettait en rage ses détracteurs qui, eux, positionnaient l’Homme en haut de l’échelle du vivant, l’Homme but ultime d’une évolution universelle qui n’aurait été créée que pour lui. Egocentrisme et vanité, quand vous nous tenez…
Dans son remarquable livre « la vie est belle », le paléontologue mondialement reconnu que fut Stephen Jay Gould écrivit quelques lignes que je ne peux m’empêcher, pour terminer ce sujet, de citer ici tant elles résument bien le sens de mon propos : « … Chaque fois que l’on redéroule le film, l’évolution prend une voie différente de celle que nous connaissons. Mais si les conséquences qui en découlent sont tout à fait différentes, cela ne veut pas dire que l’évolution est absurde et dépourvue de tout contenu signifiant : quand on redéroule le film, on s’aperçoit que chaque nouvelle voie empruntée est tout aussi interprétable, tout aussi explicable a posteriori que celle qui a été réellement suivie et que nous connaissons. Mais la diversité des itinéraires possibles montre à l’évidence que les résultats finaux ne peuvent être prédits au départ. Chacune des étapes a ses propres causes mais on ne peut dire quels états finaux seront réellement atteints ; et aucun de ceux-ci ne sera à nouveau obtenu lorsqu’on redéroulera le film, parce que chacune des nouvelles voies de l’évolution se réalise par l’enchaînement de milliers d’étapes imprévisibles. Changez faiblement les événements initiaux, si faiblement que cela peut paraître sur le moment n’avoir qu’une minime importance, et l’évolution se déroulera selon une direction toute différente. » Stephen J. Gould, in « la vie est belle, les surprises de l’évolution » Edition du Seuil, collection Sciences).
Images
1. baleines (sources : regional02.ca)
2. l'ADN et sa double hélice (sources : nature-biodiversite.forumculture.net)
3. drosophiles dont l'importance en génétique n'est plus à démontrer (sources :www.pbase.com)
4. drosophile mutée : ici, l'individu a deux paires d'ailes mais ce pourrait-être une patte surnuméraire, des ailes vestigiales, l'absence des yeux, etc. (sources : www.inrp.fr)
5. représentation 3D d'une protéine (prostaglandine). Une mutation peut modifier la dimension spatiale d'une molécule ce qui la rend incapable de reconnaître secondairement un transmetteur métabolique (sources : www.astrosurf.com)
6. le hasard est partout et nulle part (sources : ossiane.blog.lemonde.fr)
(Pour lire les légendes des illustrations, passer le pointeur de la souris dessus)
Mots-clés : baleine (évolution) - Charles Darwin - génétique - théorie de l'évolution - ADN - mutation - sélection naturelle - mouche drosophile - Joseph Thornton - hasard - brassage - dérive ou hasard d'échantillonnage - Stephen J. Gould
(les mots en gris renvoient à des sites d'informations complémentaires)
Sujets apparentés sur le blog :
1. les mécanismes de l'Evolution
2. reproduction sexuée et sélection naturelle
3. le hasard au centre de la Vie
Dernier sommaire général du blog : cliquer ICI
l'actualité du blog se trouve sur FACEBOOK
Mise à jour : 3 mars 2023


 suite notamment des textes religieux, que les espèces avaient été créées en une seule fois (sous-entendu par Dieu) et détruites, au moins pour certaines d’entre elles, de la même manière (par exemple à l’occasion d’un déluge, d’un formidable tremblement de terre ou d’une apocalypse). Précisons que le catastrophisme est le témoin d’une époque où l’on n’avait
 c’est tout bêtement parce qu’ils n’existent pas ! S’appuyant sur la

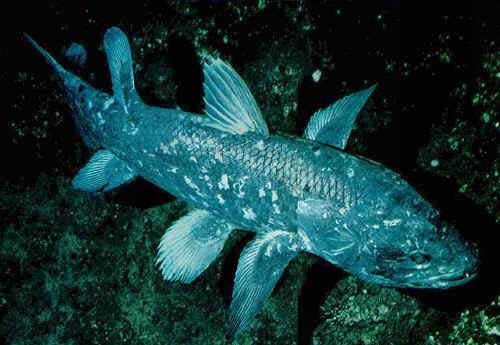
 trouva un autre en 1955, puis plus récemment une colonie entière en 1998, du côté des Comores… Par comparaison avec les nombreux fossiles de cœlacanthes que l’on possède, on a pu se rendre compte que les différences entre ceux-ci et les exemplaires actuels étaient somme toute


 l’époque, la majorité des philosophes de l’antiquité proposèrent la notion de « génération spontanée » :
 l’origine de la Vie sur Terre et aux conditions dont on supposait qu’elles prévalaient sur notre planète à son tout début. Il cherche donc à recréer ces conditions en construisant un dispositif comprenant deux grands ballons réunis par des tubulures de verre. Dans le premier, il met de l’eau chauffée sensée représentée l’océan primitif et dans le second un mélange de vapeur d’eau et de gaz parcouru par des décharges électriques (l’atmosphère primitive).
 pouvant donc permettre les premiers échanges codés entre les structures qui deviendront de vraies cellules - mais également moins stable car il ne comprend qu’un seul filament, forcément fragile. Atout toutefois primordial : ce filament peut se répliquer par simple contact. A l’inverse, ce n’est pas le cas de l’ADN, composé de deux filaments collés l’un à l’autre (la double hélice), qui est infiniment plus stable mais incapable de se répliquer seul puisqu’il faut « l’ouvrir, le lire et copier l’information génétique ». L’association des deux types d’acides nucléiques conduit à ce que l’on sait de nos jours de la transmission génétique : le « code du vivant » est stocké dans l’ADN qui varie très peu et est lu par des ARN (« messagers », « de transfert », etc.) qui permettent la transformation de l’information en molécules très précises, toujours les mêmes.
 vivant :


 exemple, citer l’exemple célèbre du paon qui s’agrémente d’une imposante traîne (il fait alors « la roue ») particulièrement handicapante s’il devait fuir un quelconque prédateur ou bien encore la cigale qui, par son craquètement, révèle à tous son emplacement. Ailleurs, certains oiseaux arborent des couleurs presque criardes (comme également certains poissons), couleurs qui les rendent visibles à de grandes distances. Chez les mammifères, on retrouve cette même caractéristique : les cerfs, par exemple, voient leurs bois se développer de façon parfois presque incapacitante. D’une manière plus générale, il existe presque toujours une différence de taille entre les individus de sexes opposés (les mâles sont souvent plus imposants chez les mammifères) et on parle alors de
 reproduction (c’est la
 faune animale dans son habitat naturel qui a apporté une réponse mais l’étude d’un petit animal de laboratoire, déjà célèbre pour avoir permis des avancées décisives en génétique : la mouche
 gènes qui explique les différences morphologiques parfois conséquentes entre les sexes. Mieux encore : on a pu se rendre compte que chez les ancêtres de la drosophile, l’abdomen n’était pas coloré ce qui laisse supposer que, avec le temps, ce caractère a été sélectionné par l’évolution et notamment la sélection sexuelle. Un individu drosophile a, un jour, au cours d’une très légère mutation, présenté le caractère « ventre noir » et ce caractère ayant attiré l’attention des femelles, ce mâle porteur de la différence a pu multiplier sa descendance jusqu’à éclipser les non-porteurs.


 avons déjà évoqué : en pareil cas, il n’est pas possible que l’individu puisse exister séparément ; ce dernier n’est plus qu’une infime partie d’un ensemble pour lui immense, la fourmilière, et pour sauver cette dernière – ou simplement la protéger – il est parfaitement envisageable de sacrifier des milliers d’individus (même les reines qu’il est toujours possible de remplacer). C’est dans ce contexte ultra-utilitariste, où chaque chose, chaque comportement à sa place sans que jamais il n’y ait la moindre fantaisie, que l’on peut se poser la question qui nous occupe aujourd’hui : comment est-il possible que l’on puisse observer chez ces animaux des comportements que l'on qualifiera d'altruistes ?
 sacrifice permet la transmission de leurs gènes à des descendants plus complètement que s’ils avaient eux-mêmes procréé. Et cela peut être mathématiquement calculé. Ainsi, en raison de la spécificité de la détermination du sexe chez les hyménoptères, une fourmi ouvrière possède les 3/4 de ses gènes en commun avec les larves pondues par la reine alors que si elle avait elle-même eu des descendants, elle n’aurait eu que la moitié de gènes en commun avec ses enfants. De ce fait, renoncer à une (potentielle) descendance devient plus compréhensible. Ce calcul fonctionne aussi avec les abeilles, les guêpes, etc.


 gentilhomme fortuné mais la place de naturaliste de bord qu'on lui avait offerte et qu'il eût le bon sens d'accepter en décida autrement : durant les cinquante-sept mois que dura son périple autour du monde, il accumula un nombre d'observations et d'échantillons incroyable qui, une fois de retour, lui permirent de réfléchir sur
 n'avait aucune idée de l'importance de la
 d'évoquer à propos du schiste de Burgess, provoqua la survenue « d'un coup de tonnerre dans un ciel serein » dans le petit monde du néodarwinisme lorsque, en 1972, il cosigna avec
 l'irruption des équilibres ponctués dans la théorie classique de l'évolution. Toutefois, lorsque je me suis intéressé à cette question une quinzaine d'années plus tard, la polémique faisait encore rage, parfois avec violence. Aujourd'hui, le calme – si je puis dire – est revenu et la plupart des paléontologues adhèrent à la théorie de Gould. On pense même probable que les


 boîte crânienne soit d'un

 clairement néandertaliennes et elles étaient enrichies par des offrandes (outils, os gravés, etc.), des fragments de colorants récoltés parfois loin du site et les positions particulières des corps. Certainement moins élaborées que les sépultures ultérieures de Sapiens, ces lieux funéraires traduisent une


